
Por qué la carne queda dura: 5 causas físicas y cómo corregirlas
La dureza en un corte de carne es la insatisfacción culinaria más extendida tanto en hogares como en establecimientos gastronómicos. Con frecuencia se atribuye este problema de forma errónea a una "mala calidad" de origen del animal; sin embargo, la dureza es la manifestación física y bioquímica de transformaciones estructurales en las proteínas musculares. Estas transformaciones ocurren por un manejo térmico inadecuado, una técnica de corte incorrecta o fallas en el proceso post mortem del músculo.
Desde la perspectiva de la biophysics cárnica, el músculo esquelético es un sistema complejo integrado por agua (75%), proteínas (20%), lípidos (3%) y minerales o carbohidratos (2%). La textura final en el plato depende del comportamiento de dos estructuras proteicas fundamentales: el tejido conectivo (encabezado por el colágeno) y el aparato contráctil miofibrilar (compuesto por actina y miosina). Cuando estas estructuras se exponen a gradientes de temperatura, fuerzas de cizallamiento o choques térmicos sin el debido control, la carne reacciona contraiéndose, expulsando su humedad interna o conservando una matriz insoluble de fibras rígidas.
En el contexto agroindustrial mexicano —supervisado por el Servicio Nacional de Sanidad, Inocuidad y Calidad Agroalimentaria (SENASICA) y regulado por Normas Oficiales Mexicanas como la NOM-009-ZOO-1994 y la NOM-194-SSA1-2004—, comprender estas variables físicas permite transformar un corte potencialmente duro en una pieza de alta palatabilidad. A continuación, analizamos las cinco causas físicas fundamentales que endurecen la carne y el método científico para corregir cada una.
Exceso de tejido conectivo sin tiempo de cocción suficiente
El exceso de tejido conectivo endurece la carne cuando un corte rico en colágeno se somete a altas temperaturas por un periodo breve, impidiendo su conversión en gelatina. Esta falta de tiempo térmico mantiene la triple hélice proteica intacta y rígida, ofreciendo una alta resistencia mecánica a la masticación. Para corregirlo, se requiere cocción lenta en medio húmedo a temperaturas de entre 70 °C y 85 °C por varias horas.
Mecanismo biomecánico: el colágeno y su transición a gelatina
El tejido conectivo intramuscular (IMCT, por sus siglas en inglés) está constituido principalmente por colágeno tipo I y III, organizado en tres capas estructurales: epimisio, perimisio y endomisio. El perimisio es el principal responsable de la llamada "dureza de fondo" (background toughness). La molécula de colágeno consiste en una triple hélice de cadenas polipeptídicas estabilizadas por enlaces cruzados intermoleculares (piridinolina e histidino-hidroximerodesmosina).
A medida que el animal envejece o utiliza intensamente sus músculos (como en las extremidades o el lomo de trabajo), estos enlaces cruzados maduran y se vuelven térmicamente estables. Investigaciones en la materia, como las publicadas por Peter Purslow en la revista Meat Science[1], demuestran que el colágeno comienza su denaturación térmica entre los 60 °C y 65 °C. Durante esta fase inicial, las fibras de colágeno se contraen longitudinalmente hasta un tercios de su longitud original, lo que genera una presión hidrostática sobre los haces musculares y los endurece si la temperatura sube rápidamente.
Sin embargo, si la temperatura se mantiene de forma prolongada entre los 70 °C y los 85 °C en presencia de agua, la estructura helicoidal del colágeno se colapsa hidrolíticamente, rompiendo los enlaces de hidrógeno y solubilizándose en gelatina. La gelatina es una proteína blanda y retráctil que no solo elimina la resistencia física del tejido, sino que recubre las fibras musculares reteniendo agua y aportando una sensación jugosa en boca.
Cómo corregirlo: métodos hídricos y cocciones lentas (Low & Slow)
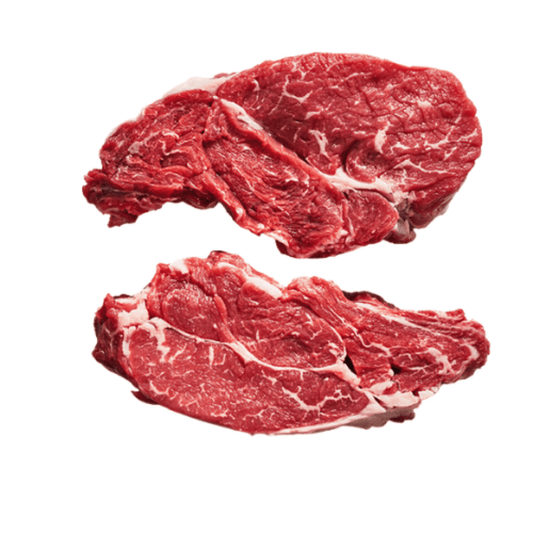
Para corregir la dureza derivada del tejido conectivo, la estrategia fundamental es el tiempo expuesto a temperatura controlada, no la intensidad del fuego. Cortes anatómicos de alta tracción mecánica —como el suadero, el diezmillo, el pescuezo o la Espaldilla de Cordero— no deben prepararse nunca a la parrilla con calor directo de alta intensidad.
Los métodos idóneos son el braseado, el estofado, el horneado a baja temperatura o la cocina al vacío (sous-vide). Al mantener la temperatura interna del centro térmico del corte entre 75 °C y 82 °C durante un lapso de 3 a 8 horas (dependiendo del grosor del volumen muscular), se logra la conversión casi completa del colágeno perimisial en gelatina.
| Corte y Composición | Contenido de Colágeno | Método de Cocción Recomendado | Parámetros de Tiempo y Temperatura |
|---|---|---|---|
| Pez, Diezmillo, Chambarete | Alto (3.5% - 5.0% peso seco) | Braseado / Cocción Lenta Húmeda | 80 °C - 85 °C por 4 a 6 horas |
| Espaldilla y Pierna de Cordero | Moderado-Alto (2.5% - 4.0%) | Horno húmedo / Sous-Vide | 75 °C - 80 °C por 5 a 8 horas |
| Filete (Psoas major) | Muy Bajo (< 1.5% peso seco) | Calor Seco Directo (Sellar/Parrilla) | 54 °C - 57 °C (Término Medio) en minutos |
Sobrecocción y contracción de las proteínas miofibrilares
La sobrecocción endurece la carne debido a la desnaturalización completa de la actina y miosina, las cuales se contraen intensamente al superar los 66 °C. Esta contracción miofibrilar reduce el volumen celular y exprime el agua libre retenida en el sarcoplasma, dejando una estructura proteica densa, seca y leñosa. La solución consiste en monitorear la temperatura interna con termómetro de inserción y retirar la pieza antes de rebasar los 60 °C-63 °C en cortes magros.
La física del sarcómero: miosina, actina y la pérdida de agua celular
El aparato contráctil de las células musculares está formado por sarcómeros, cuyas unidades funcionales son los filamentos gruesos de miosina y los filamentos delgados de actina. Estas proteínas reaccionan a temperaturas específicas durante la cocción, exhibiendo comportamientos diferenciados que dictan la textura del corte:
- Miosina (40 °C - 50 °C): Comienza a desnaturalizarse y coagular a partir de los 40 °C. Entre los 50 °C y 53 °C se pliega por completo, aumentando ligeramente la firmeza estructural del músculo y volviéndolo opaco, pero conservando la mayor parte de su agua intracelular. Este rango corresponde a los términos sellado (rare) e inglés.
- Proteínas Sarcoplásmicas (55 °C - 62 °C): La mioglobina y otras enzimas solubles se desnaturalizan, cambiando el color del jugo interno de rojo brillante a rosado y posteriormente a gris pardo. La carne alcanza su punto óptimo de jugosidad y terneza (término medio a tres cuartos).
- Actina (66 °C - 73 °C): Es la proteína estructural crítica. Cuando la temperatura interna del centro térmico alcanza los 66 °C, la actina se desnaturaliza bruscamente. Esta desnaturalización provoca una contracción severa del sarcómero en dirección longitudinal y transversal.
Al contraerse las miofibrillas por la alteración de la actina, la red proteica actúa como una esponja presionada con fuerza: el espacio interfilamentar se reduce drásticamente y el agua libre (que representa hasta el 70% del peso del músculo) es expulsada al exterior. Diversos estudios de termodinámica en alimentos confirman que la pérdida de volumen por drenaje de jugo se duplica al pasar de 60 °C a 70 °C. Si el proceso continúa hacia los 80 °C en cortes magros como el filete o la bola, el tejido pierde toda plasticidad y se transforma en una masa dura y quebradiza.
Cómo corregirlo: control térmico de precisión e inercia térmica
Para evitar la contracción destructiva de la actina en cortes de primera calidad y bajo tejido conectivo, la regla biomecánica es el control riguroso de la temperatura interna mediante un termómetro digital de sonda rápida.
Es indispensable considerar la inercia térmica (carryover cooking). Cuando una pieza de carne se retira de la fuente de calor (parrilla, sartén o brasero), la energía acumulada en la superficie continúa desplazándose hacia el centro térmico, elevando la temperatura interna entre 2 °C y 5 °C adicionales durante el periodo de reposo. Por ello, una pieza debe retirarse del fuego unos grados antes de alcanzar el objetivo final deseado.
- Término Medio (Medium Rare): Retirar del fuego a los 52 °C - 54 °C para alcanzar un reposo final de 55 °C - 57 °C. Filamentos de miosina coagulados, actina nativa intacta, máxima capacidad de retención de agua.
- Término Tres Cuartos (Medium Well): Retirar a los 60 °C para reposar a 63 °C. Inicio de desnaturalización sarcoplásmica, jugo ligeramente rosado, firmeza moderada.
- Bien Cocido (Well Done): Desnaturalización total de actina (> 68 °C). Pérdida de más del 30% del volumen en fluidos. Recomendado únicamente para cortes con marmoleo extremo o en recetas que integren salsas de hidratación exterior.
Para simplificar el manejo de cortes delgados o marinados, como la Arrachera Natural, se recomienda aplicar calor seco a temperatura muy alta (más de 230 °C en superficie) durante tiempos breves (2 a 3 minutos por lado). Esto genera la reacción de Maillard en el exterior sin permitir que la onda de calor interior desnaturalice la actina en el núcleo muscular.
Orientación incorrecta del corte respecto a la fibra muscular
Cortar la carne a favor de la fibra muscular mantiene los haces de miofibrillas intactos a lo largo de la lonja, obligando a los dientes del consumidor a ejercer la fuerza mecánica necesaria para romper las vainas de perimisio. La corrección consiste en identificar el sentido de las fibras y rebanar la pieza de forma estrictamente perpendicular (a 90°) respecto a la dirección de los haces musculares.
La geometría del músculo: por qué la dirección de la lámina cambia la textura
El músculo esquelético es un tejido anisotrópico, lo que significa que sus propiedades mecánicas no son iguales en todas direcciones. Las fibras musculares son células cilíndricas alargadas dispuestas en paralelo y agrupadas en fascículos envueltos por perimisio.
Cuando la carne se corta a favor de la fibra (paralelo a la dirección de los fascículos), el trozo servido contiene hileras continuas de colágeno y proteínas miofibrilares de varios centímetros de longitud. Al masticar, los molares deben aplicar una elevada fuerza de cizallamiento (*shear force*) para romper físicamente estas estructuras a lo largo de su eje de tensión. En pruebas de laboratorio mediante el análisis de cizalla Warner-Bratzler, la carne cortada a favor de la fibra registra valores de resistencia mecánica hasta tres veces superiores que la misma pieza rebanada en sentido transversal[2].
En cambio, al realizar un corte perpendicular a la fibra (across the grain), la hoja del cuchillo sustituye la labor mecánica de la masticación. Se cortan de forma anticipada los fascículos y las vainas de perimisio en segmentos de apenas milímetros de longitud. Al ingerir el bocado, la dentadura únicamente necesita separar las fibras ya segmentadas, lo que el cerebro percibe como una textura tierna y fácil de disgregar.
Cómo corregirlo: identificación del 'grain' y técnica de trinchado
La corrección geométrica no requiere equipamiento sofisticado, sino la correcta observación anatómica de la pieza antes y después de la cocción:
- Inspección visual del grano: Antes de someter la pieza al fuego, identifique la dirección en la que corren las líneas paralelas de la fibra. En cortes como la arrachera, la falda, el flank steak, el vacío o el tri-tip, la dirección de los haces musculares es evidente a simple vista.
- Alineación del cuchillo: Posicione la hoja del cuchillo formando un ángulo exacto de 90° respecto a la línea visual de las fibras.
- Inclinación opcional de la hoja (corte al sesgo): En láminas de carne delgadas o fibras muy gruesas, incline el cuchillo a 45° respecto a la superficie vertical mientras mantiene los 90° respecto al eje longitudinal de la fibra. Esto incrementa la superficie expuesta de la lonja y maximiza la interrupción del tejido conectivo.
- Trinchado post-reposo: Trinche siempre la carne tras haber completado el tiempo de reposo térmico. Si se rebanan las fibras en caliente inmediatamente al salir de la parrilla, la presión interna expulsará los jugos retidos antes de que la matriz proteica se reestabilice.
Falta de maduración post mortem (Post-mortem aging)
La falta de maduración post mortem produce carne dura porque el músculo entra en rigor mortis tras el sacrificio, fijando irreversiblemente los puentes de actomiocina sin dar tiempo a que las enzimas endógenas degraden la estructura citoesquelética. Para corregirlo, la carne requiere una fase de almacenamiento refrigerado controlado (maduración en húmedo o en seco) de al menos 14 a 21 días, permitiendo la degradación proteolítica natural.
La bioquímica de la autólisis: calpaínas, catepsinas y la resolución del Rigor Mortis
Tras la sangría del animal en el rastro, cesa el flujo de oxígeno y glucosa al tejido muscular. Las células recurren a la glucólisis anaeróbica para continuar sintetizando trifosfato de adenosina (ATP), acumulando ácido láctico y reduciendo el pH del músculo de un valor inicial fisiológico de ~7.2 a un pH final de equilibrio de entre 5.4 y 5.8.
Cuando las reservas de glucógeno y ATP se agotan por completo, la bomba de calcio de las células deja de funcionar. Los iones $\text{Ca}^{2+}$ inundan el sarcoplasma, provocando la unión irreversible entre los filamentos de actina y miosina. El músculo pierde toda su elasticidad y entra en el estado rígido conocido como rigor mortis. En esta fase, cocinar la carne da como resultado un producto extremadamente duro e inelástico.
La maduración (aging o acondicionamiento) es el proceso bioquímico mediante el cual se resuelve esta dureza inicial a través de la autólisis enzimática intrínseca del músculo[3]:
- Sistema de las Calpaínas ($\mu$-calpaína y m-calpaína): Son proteasas neutras activadas por el calcio intracelular. Actúan en los primeros días post mortem degradando selectivamente las proteínas de soporte del citoesqueleto: la titina (que une la miosina a la línea Z), la nebulina, la desmina y los discos Z. Aunque las calpaínas no destruyen los filamentos gruesos de miosina ni la actina directa, al desmantelar el andamiaje que los sostiene, la estructura del sarcómero pierde su cohesión rígida.
- Catepsinas: Son enzimas lisosomales que operan a un pH más ácido en etapas posteriores de la maduración, contribuyendo a la fragmentación de la red miofibrilar y la degradación parcial de proteínas secundarias del tejido conectivo.
Para profundizar en la relevancia de las transformaciones biológicas del músculo refrigerado en comparación con procesos deficientes, se puede consultar nuestro análisis técnico sobre Carne Fresca Local vs. Congelada: Por qué la calidad empieza en la célula.
Cómo corregirlo: trazabilidad, tiempo de reposo y verificación en compra
A diferencia de los errores cometidos en la cocina, la falta de maduración es una deficiencia originada en la cadena de procesamiento de la carne. Sin embargo, el distribuidor y el consumidor pueden gestionar y corregir esta variable mediante las siguientes prácticas:
- Maduración en Húmedo (Wet Aging): Es la técnica industrial estándar. Los cortes primarios se envasan al vacío en bolsas de alta barrera al oxígeno y se almacenan a temperaturas estrictas de entre 0 °C y 2 °C durante un periodo de 14 a 28 días. En este entorno anóxico, las calpaínas desintegran la red citoesquelética sin pérdidas sustanciales de peso por evaporación.
- Maduración en Seco (Dry Aging): La carne se expone sin empaque en cámaras con temperatura controlada (1 °C a 3 °C), humedad relativa (75% a 85%) y flujo de aire continuo durante 30 a 60 días. Además de la acción enzimática de fragmentación proteica, ocurre un proceso de concentración de sabores por pérdida de humedad hídrica (hasta un 15%-20%) y desarrollo de perfil sensorial complejas.
- Verificación de sello y origen TIF: Los establecimientos certificados bajo la categoría Tipo Inspección Federal (TIF) por SENASICA y regidos por las especificaciones de la NOM-009-ZOO-1994 garantizan cadenas de refrigeración continuas y tiempos mínimos de estabilización post mortem, evitando la venta de carne "caliente" o en pleno pico de rigor mortis.
Acortamiento por frío (Cold Shortening)
El acortamiento por frío ocurre cuando las canales recién sacrificadas se enfrían por debajo de los 10 °C-12 °C de forma demasiado rápida, mientras el pH del músculo sigue estando por encima de 6.0 y aún existe ATP disponible. Esta caída violenta de temperatura estimula una liberación masiva de calcio sarcoplásmico que contrae los sarcómeros hasta un 50% de su longitud, generando una dureza irrecuperable en la maduración posterior. Su prevención depende del estricto cumplimiento de curvas térmicas en la planta frigorífica y del uso de estimulación eléctrica.
El shock térmico prerigor: calcio libre y contracción irreversible
Afirmación sanitaria omitida automáticamente: requiere revisión editorial y evidencia concluyente.
Cuando el músculo recién sacrificado se expone a temperaturas de refrigeración agresivas (inferiores a 10 °C) cuando las reservas de ATP aún son elevadas y el pH no ha descendido del valor crítico de 6.0, el retículo sarcoplásmico y las mitocondrias de las células sufren un shock térmico. Incapaces de retener o reabsorber el calcio en sus membranas heladas, estas organelas liberan masivamente iones $\text{Ca}^{2+}$ hacia el sarcoplasma.
Dado que la célula aún dispone de ATP como fuente energética, los iones de calcio desencadenan un ciclo de contracción muscular extremo y no fisiológico. Los sarcómeros se contraen violentamente, acortándose hasta un 30% a 50% respecto a su longitud en reposo. A diferencia de la contracción moderada del rigor mortis estándar (alrededor del 10%-15%), este empaquetamiento superdenso de los filamentos de actina y miosina ocluye mecánicamente los sitios de unión de las enzimas proteolíticas. Como consecuencia, las calpaínas no pueden acceder a los discos Z, inhabilitando la maduración posterior: la carne permanecerá híper-dura sin importar cuántas semanas se almacene en refrigeración.
Cómo corregirlo: control estricto en la planta de proceso y estimulación eléctrica
La corrección del cold shortening no se puede realizar en la cocina del restaurante ni en el hogar; debe ejecutarse estrictamente durante el faenado e inspección veterinaria en la planta de beneficio. Para conocer a detalle la ingeniería detrás del control térmico en la cadena de frío TIF, puede revisar nuestro artículo explicativo sobre La anatomía del frío: El viaje de la carne desde la planta TIF hasta tu mesa.
Las plantas procesadoras aplican dos mecanismos biotecnológicos principales respaldados por la normativa sanitaria oficial:
- Curvas de Enfriamiento Gradual: La Norma Oficial Mexicana NOM-008-ZOO-1994 y la NOM-009-ZOO-1994 regulan la construcción y operación sanitaria de los rastros TIF. Las cámaras de pre-enfriamiento están programadas para monitorear la curva térmica: la temperatura de la masa muscular profunda de la canal no debe descender de los 10 °C antes de que hayan transcurrido entre 10 y 12 horas post mortem, tiempo suficiente para que la glucólisis agote el ATP y baje el pH a niveles seguros (< 6.0).
- Estimulación Eléctrica Post Mortem (Electrical Stimulation - ES): Inmediatamente después del insensibilizado y sangrado del animal, se aplica una descarga de corriente eléctrica de alto o bajo voltaje (desde 50 V hasta 1100 V) a la canal. La corriente provoca contracciones musculares repetidas que aceleran vertiginosamente la glucólisis anaeróbica. Esto agota las reservas de glucógeno y ATP de horas a minutos, forzando la caída del pH por debajo de 6.0. Con el ATP agotado, el músculo entra en rigor mortis de forma anticipada y segura, haciendo física y químicamente imposible que ocurra el acortamiento por frío al ingresar a las cámaras frigoríficas de baja temperatura.
Matriz de diagnóstico integral y solución en la industria de la carne
Para simplificar el diagnóstico rápido de las causas de dureza y aplicar la corrección correspondiente en cocina o en la selección del proveedor, la siguiente matriz sintetiza los parámetros bioquímicos, los síntomas visibles y la solución técnica de cada caso:
| Causa Física / Bioquímica | Síntoma Visible en el Plato | Mecanismo Molecular Subyacente | Acción Correctora Correcta |
|---|---|---|---|
| Exceso de Tejido Conectivo | Resistencia gomosa o correosa; hebras duras imposibles de masticar. | Colágeno intramuscular perimisial insoluble sin hidrolizar. | Cocción húmeda prolongada (Low & Slow) a 75 °C - 85 °C para transformar colágeno en gelatina. |
| Sobrecocción Miofibrilar | Carne extremadamente seca, de color grisáceo uniforme, textura leñosa. | Desnaturalización brusca de actina (> 66 °C) y expulsión del agua de retención. | Uso de termómetro de sonda; retirar entre 54 °C y 60 °C considerando el incremento por reposo. |
| Corte a Favor de la Fibra | Tiras delgadas que se "deshilachan" en hebras largas y difíciles de cortar con los dientes. | Orientación paralela de los fascículos y vainas de perimisio al cizallamiento. | Identificar la dirección del 'grain' y rebanar transversalmente a 90° respecto a las fibras. |
| Falta de Maduración Post Mortem | Corte magro que luce fresco y rojo pero presenta rigidez elástica uniforme. | Puentes de actomiocina fijos sin degradación citoesquelética por calpaínas. | Someter a maduración en húmedo (vacío) o seco a 0 °C - 2 °C de 14 a 28 días; adquirir producto TIF. |
| Acortamiento por Frío (Cold Shortening) | Dureza hiper-densa e inalterable que no mejora ni con marinados ni con cocción prolongada. | Contracción del sarcómero de hasta 50% por liberación masiva de $\text{Ca}^{2+}$ prerigor (< 10 °C). | Control de enfriamiento en rastro TIF y aplicación de estimulación eléctrica post mortem. |
En el centro de México, particularmente en la región de Puebla y Cholula, la distribución cárnica para restaurantes de alta especialización y consumidores exigentes ha evolucionado hacia la integración de esta ciencia. La comprensión de los fenómenos de la biomecánica muscular permite a marcas especializadas como Distribuidora San Pedro Cholula (DSPC) garantizar procesos de empaque al vacío y maduración en húmedo controlada que protegen la integridad de las células proteicas, ofreciendo cortes con la máxima terneza, juosidad y seguridad alimentaria desde el rastro TIF hasta la mesa final.